
Как лизосома реагирует на стресс: ученые МФТИ создали математическую модель
Ученые Московского физико-технического института совместно с коллегами из России, Китая и Франции разработали интерактивную математическую модель ионного и водного баланса лизосом — клеточных органелл, которые отвечают за переработку питательных веществ и внутриклеточных отходов, а также участвуют в регуляции клеточного метаболизма.
Новая модель позволяет воспроизводить поведение лизосомы не только в нормальных условиях, но и при различных стрессовых воздействиях: от кратковременного повышения проницаемости мембраны до накопления веществ, которые органелла не способна переработать. Кроме того, с ее помощью можно заранее оценивать последствия экспериментального вмешательства в работу ионных каналов и транспортеров лизосомы.
Интерактивная версия модели доступна на сайте lysomodel.mipt.ru. Ее можно запустить прямо в браузере и посмотреть, как меняются кислотность среды (pH), концентрации ионов, мембранный потенциал и другие параметры лизосомы, например при отключении протонного насоса или изменении проницаемости мембраны. Исследование опубликовано в Journal of General Physiology. Работа выполнена при поддержке Российского научного фонда (гранты № 24-24-00504 и № 24-74-00059) и Министерства науки и высшего образования РФ (соглашение № 075-03-2026-305, проект FSMG-2024-0012).
Лизосомы часто называют клеточными «перерабатывающими заводами». Внутри них поддерживается кислая среда с pH около 4,5–5,0, необходимая для работы ферментов, расщепляющих сложные молекулы. Кроме того, лизосомы служат одним из внутриклеточных хранилищ кальция и участвуют в регуляции обмена веществ. Нарушения их работы связаны с развитием нейродегенеративных заболеваний, сахарного диабета второго типа и ряда редких наследственных патологий.
Несмотря на важную роль этих органелл, существовавшие ранее теоретические модели не могли одновременно воспроизвести весь набор экспериментально наблюдаемых параметров лизосом. В частности, практически не изученным оставался вопрос о том, как органеллы реагируют на различные стрессовые воздействия.
Из-за этого математические модели было сложно использовать для планирования экспериментов и интерпретации их результатов. Между тем понимание того, как клетка адаптируется к неблагоприятным условиям, противостоит повреждениям и восстанавливает нормальную работу, необходимо для разработки новых подходов к лечению заболеваний. Поэтому механизмы клеточного стресс-ответа сегодня активно изучают не только академические исследователи, но и фармацевтические компании и врачи. В частности, разработкой заинтересовалась американская компания Lysoway Therapeutics.
Чтобы создать более реалистичную модель, исследователи из МФТИ и их коллеги пошли от эксперимента к теории. Основой для расчетов стали обширные данные, полученные с помощью метода пэтч-кламп на изолированных лизосомах.
Суть метода заключается в том, что к мембране искусственно раздутой органеллы подводят тонкую стеклянную пипетку со встроенным электродом. После установления контакта исследователи могут непосредственно измерять электрические токи, проходящие через мембрану. Это позволяет изучать работу отдельных ионных каналов и транспортеров и определять, сколько ионов проходит через каждый белок при разных значениях pH и мембранного потенциала.
Николай Ильинский, кандидат физико-математических наук, старший научный сотрудник лаборатории старения и возрастных нейродегенеративных заболеваний Центра исследований молекулярных механизмов старения и возрастных заболеваний ЛФИ МФТИ, доцент кафедры биофизики ЛФИ МФТИ, прокомментировал подход исследователей:
«Мы встроили в модель белки с экспериментально определенными характеристиками на основе данных, полученных нашим соавтором, уважаемым ученым Цаном Чуньлеем (Chunlei Cang), профессором Научно-технического университета Китая (University of Science and Technology of China). Он проделал огромную работу, охарактеризовав около 10 разных лизосомных транспортеров методом пэтч-кламп лизосом, заложив фундамент для строительства нашей модели, за что мы ему искренне благодарны».
В основе модели лежит система обыкновенных дифференциальных уравнений, описывающих, как со временем меняются концентрации ионов, объем лизосомы и электрический потенциал на ее мембране. Исследователи использовали математические подходы и константы из более ранних работ, но существенно обновили набор белков, участвующих в переносе ионов через мембрану.
«Мы начали строить теоретические предсказания, чтобы объяснить неожиданные результаты своих экспериментов, — поясняет Николай Ильинский. — Лизосома находилась в живой клетке, которая испытывала “голод”. При принудительном подщелачивании оказывалось, что кислотность лизосомы нестабильна.
Соавтор исследования, Семен Валерьевич Нестеров, предположил, что от голода в лизосоме снизилась буферная емкость, то есть способность противостоять изменению pH при добавлении кислот или щелочей. София Федоровна Назарова подтвердила эти предположения, заложив снижение буферной емкости в модель и получив те же “неспокойные” отклики, которые мы видели на клетках».
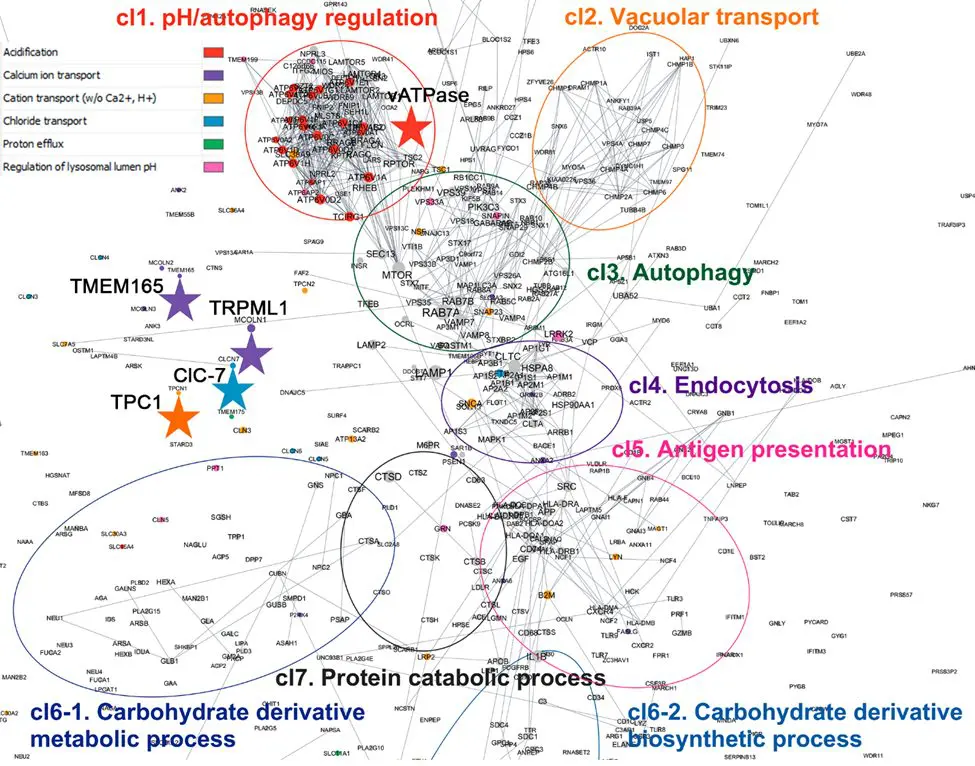
Для систематизации данных исследователи сначала составили перечень белков, обнаруженных в лизосомах человека. В базе Gene Ontology они нашли 823 таких белка, построили сеть их взаимодействий и разделили ее на семь функциональных кластеров. Они отвечают за различные клеточные процессы, включая эндоцитоз, аутофагию, регуляцию кислотности и транспорт веществ через мембраны.
Особое внимание ученые уделили 99 белкам, связанным с поддержанием кислой среды внутри лизосомы. Среди них — протонные насосы, ионные каналы для кальция, натрия, калия и хлора, а также белки, участвующие в переносе протонов через мембрану.
В математическую модель включили те белки из этого списка, для которых уже были экспериментально измерены ионные токи методом пэтч-кламп. Иными словами, исследователи располагали данными о том, как именно каждый из этих белков переносит ионы в зависимости от их концентрации и мембранного потенциала. В итоговую модель вошли вакуолярная H⁺-АТФаза, хлоридный обменник ClC-7, кальциевый канал TRPML1, натриевый канал TPC1 и кальциево-протонный антипортер TMEM165.
Такой набор позволил учесть основные механизмы ионного транспорта в лизосоме. При этом многие другие белки, потенциально влияющие на ее работу, пока не включены в расчеты: для этого еще предстоит экспериментально определить их свойства.
София Назарова, студентка второго курса магистратуры Физтех-школы физики и исследований имени Л. Д. Ландау (ЛФИ МФТИ), рассказала о работе над моделью:
«По сути, основная работа заключалась в функциональном и математическом описании работы белков, обеспечивающих активный транспорт ионов. Конечно, невозможно учесть все факторы, влияющие на их работу, но мы постарались собрать максимум информации и объединить ее в строгую математическую модель.
В предыдущих моделях оставались неразрешенными несколько принципиальных вопросов. Какой транспортер поддерживает высокую концентрацию натрия в лизосоме? А кальция? Уже на финальном этапе работы над публикацией мы обнаружили, что только что вышли две статьи, в которых наконец нашли белок, отвечающий за наполнение лизосомы кальцием, — TMEM165. Мы включили параметры работы этого транспортера в модель, что уточнило ее и сделало по-настоящему современной. Это поможет расширить понимание работы лизосом и ускорить ее изучение».
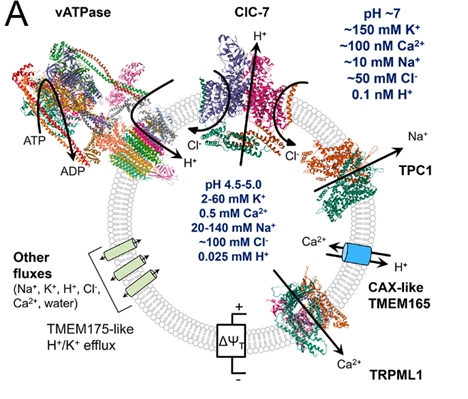
Каждый из включенных в модель белков выполняет свою функцию. Вакуолярная H⁺-АТФаза (vATPase) — главный протонный насос лизосомы. Используя энергию АТФ, она закачивает протоны внутрь органеллы и тем самым поддерживает необходимую для работы ферментов кислую среду. Хлоридный обменник ClC-7 переносит внутрь два иона хлора в обмен на один протон, перемещаемый наружу. Благодаря этому компенсируется электрический заряд, возникающий при накоплении положительно заряженных протонов.
Кальциевый канал TRPML1 обеспечивает выход ионов кальция из лизосомы, а натриевый канал TPC1 участвует в выведении натрия. Кальциево-протонный антипортер TMEM165 работает в противоположном направлении: он переносит кальций внутрь органеллы, используя энергию протонного градиента. Таким образом, разные белки совместно регулируют ионный состав лизосомы и поддерживают ее внутреннюю среду.
Чтобы модель соответствовала реальным свойствам органеллы, исследователи подобрали ее параметры — количество молекул каждого транспортера и их проницаемость для ионов. Для этого они добивались максимального совпадения расчетных токов с экспериментальными зависимостями, полученными при измерениях методом пэтч-кламп на изолированных лизосомах.
«Мы постарались построить компьютерную модель поддержания гомеостаза лизосом, которая бы проверялась на адекватность не только стабильностью и соответствием выдаваемых параметров экспериментальным, — поясняет Николай Ильинский. — Наша модель проверялась стрессами: созреванием лизосомы, разрывом ее мембраны, разбуханием, подщелачиванием и накоплением мусора».
Первым испытанием стало моделирование созревания лизосомы из поздней эндосомы. По мере созревания в мембране органеллы постепенно увеличивалось количество протонных насосов vATPase, а активность Na⁺/K⁺-АТФазы снижалась. В результате примерно за полтора часа pH внутри органеллы уменьшался с 5,8 до 4,6. Полученное значение соответствует результатам предыдущих экспериментов на выделенных лизосомах.
Следующий сценарий — повреждение мембраны. С возрастом клетки ее целостность может нарушаться, а искусственное повреждение мембран лизосом в опухолевых клетках рассматривается как один из подходов к противоопухолевой терапии. Поэтому исследователям было важно понять, как органелла реагирует на подобный стресс.
Расчеты показали, что кратковременное увеличение проницаемости мембраны приводит к ожидаемым последствиям: среда внутри лизосомы становится менее кислой, часть кальция выходит наружу, а объем органеллы немного увеличивается. При этом изменения не обязательно приводят к необратимому повреждению.
Похожие обратимые сдвиги основных параметров модель предсказывала и в других ситуациях. Например, при кратковременном отключении протонной помпы vATPase или усилении притока воды лизосома подщелачивалась, но после прекращения воздействия ее состояние могло восстановиться. Это позволило исследователям оценить, как органелла справляется с временными нарушениями ионного и водного баланса.
Особенно интересным оказался результат, связанный с кальцием. Моделирование показало, что как при ингибировании vATPase, так и при дополнительном оттоке протонов концентрация кальция внутри лизосомы может уменьшаться почти вдвое. В лабораторных экспериментах усиленный отток протонов вызывали оптогенетически — с помощью специальных светочувствительных белков родопсинов.
Модель помогла объяснить этот эффект. Оказалось, что при подщелачивании кальций может теряться не только из-за усиления его выхода через канал TRPML1, но и из-за ослабления обратного транспорта через TMEM165. Иными словами, концентрация кальция снижается одновременно вследствие изменения двух противоположно направленных процессов: его выведения из органеллы и поступления обратно внутрь. Это особенно важно, поскольку мутации в гене TRPML1 связаны с развитием редкого наследственного заболевания — муколипидоза IV типа.
Наконец, исследователи проверили, как модель описывает накопление веществ, которые лизосома не способна эффективно переработать. Для этого они рассмотрели поведение слабоосновных катионных амфифильных соединений, способных накапливаться внутри органеллы и действовать как своеобразные «протонные губки». Подобный сценарий имитирует ситуацию, когда внутри лизосомы постепенно скапливаются вещества, которые она не может расщепить и вывести.
Этот процесс имеет непосредственное отношение к лизосомным болезням накопления, при которых нарушается переработка определенных веществ. Расчеты показали, что протонирование накапливающихся соединений повышает осмотическое давление внутри органеллы. В результате в нее поступает вода, лизосома набухает, а ее внутренняя среда становится менее кислой.
Полученные результаты согласуются с экспериментальными наблюдениями и помогают понять, как вещества, способные накапливаться в лизосомах, нарушают работу органеллы. Подобный эффект может иметь значение и для оценки безопасности лекарств. Например, хлорохин, который длительно применяют при некоторых аутоиммунных заболеваниях, в том числе ревматических, способен вызывать накопление веществ в лизосомах клеток пигментного эпителия сетчатки. Это может приводить к развитию хлорохиновой ретинопатии — поражению сетчатки глаза.
Главное отличие новой модели заключается в том, что она не просто описывает устойчивое состояние лизосомы, но и позволяет проверять, как органелла реагирует на реалистичные стрессовые воздействия. С ее помощью можно предсказывать последствия целенаправленного вмешательства в работу отдельных ионных транспортеров и каналов. В частности, такие воздействия можно осуществлять оптогенетически — с помощью родопсинов, направленных в лизосомы и позволяющих управлять переносом протонов светом.
Это открывает возможности для более точного планирования экспериментов и поиска способов поддерживать устойчивость лизосом при старении и различных заболеваниях. Следующий важный шаг в развитии модели — экспериментальное обнаружение и описание свойств лизосомного NHE-подобного белка, который, предположительно, отвечает за поддержание высокой концентрации натрия внутри органеллы. Пока его свойства не определены, ни одна из существующих моделей не может полностью воспроизвести физиологический градиент натрия в лизосоме.
Работа выполнена при поддержке Российского научного фонда (гранты № 24-24-00504 и № 24-74-00059) и Министерства науки и высшего образования РФ (соглашение № 075-03-2026-305, проект FSMG-2024-0012).
Источник: В горе и радости: ученые МФТИ смоделировали поведение лизосомы в обычных и стрессовых условиях — За науку